一、一颗小球,和一幅关于生命的画
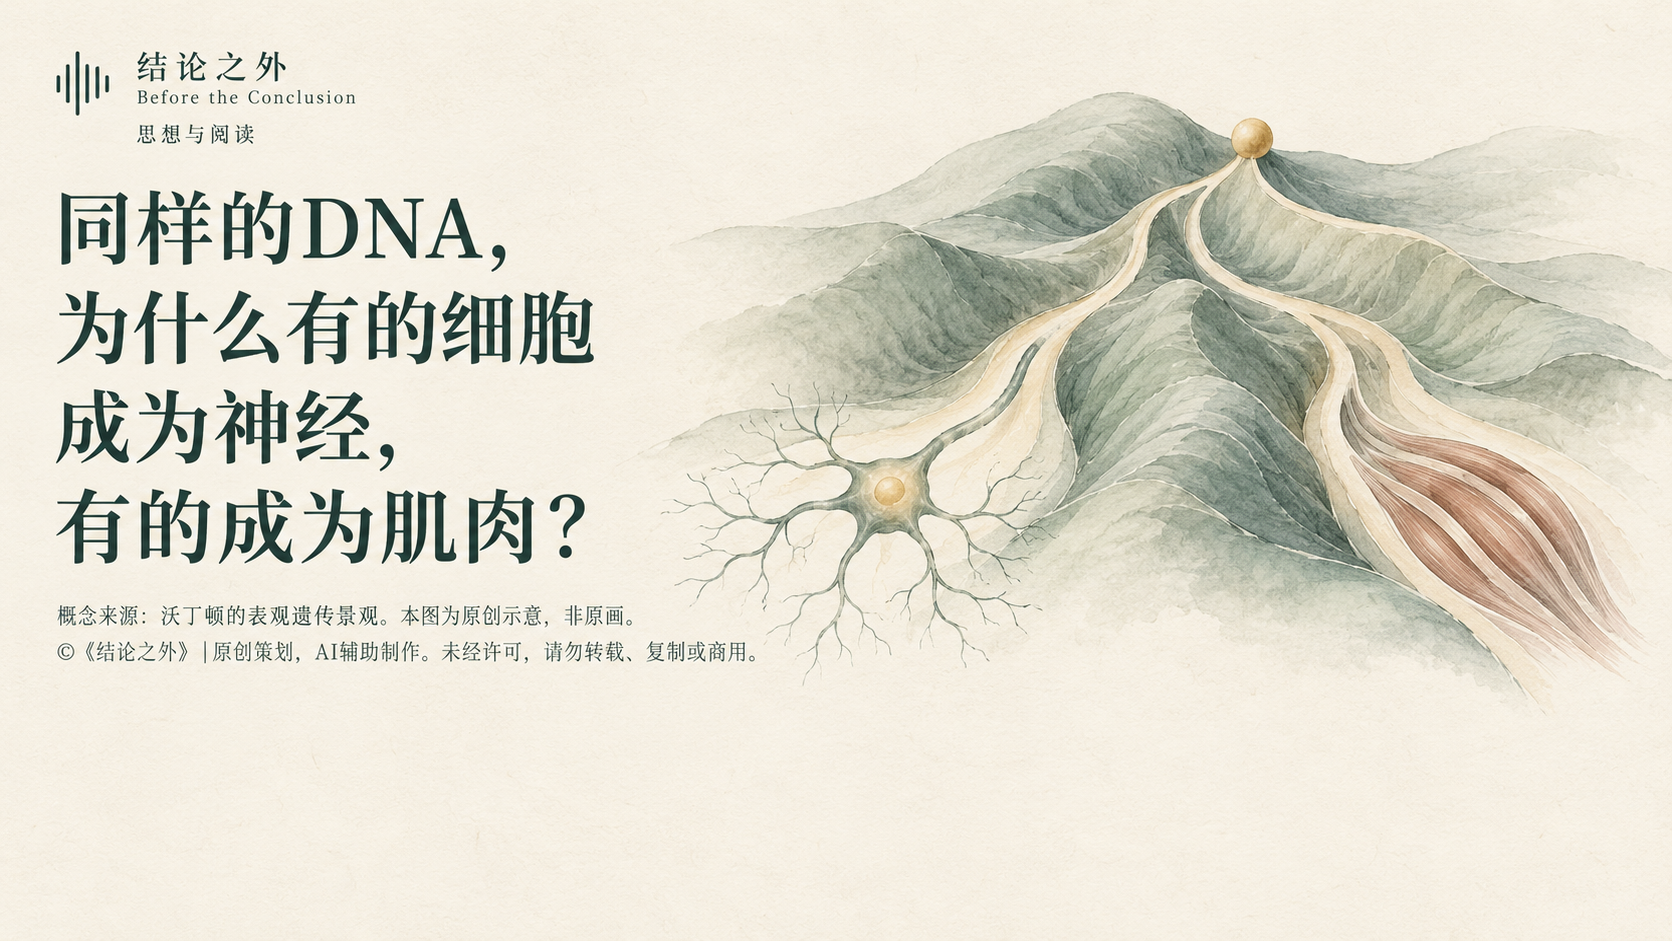
一颗小球停在山坡上。它的下方没有平整的大路,只有一道道逐渐分开的沟谷。越往下走,山谷之间的脊线越高,小球能够进入的路线也越来越有限。沿着其中一条路,它将成为神经细胞;沿着另一条路,它可能成为肌肉细胞,或者身体里的其他细胞。
这不是一幅地理示意图。它是英国发育生物学家康拉德·沃丁顿留给生物学的一幅著名图景,通常被称为“表观遗传景观”。这一想法在20世纪上半叶逐渐成形,1957年,沃丁顿在《基因的策略》中呈现了后来广为流传的版本。²
画面很简单,问题却大得惊人:一个受精卵,怎样逐步形成一个拥有神经、肌肉、血液和皮肤的身体?
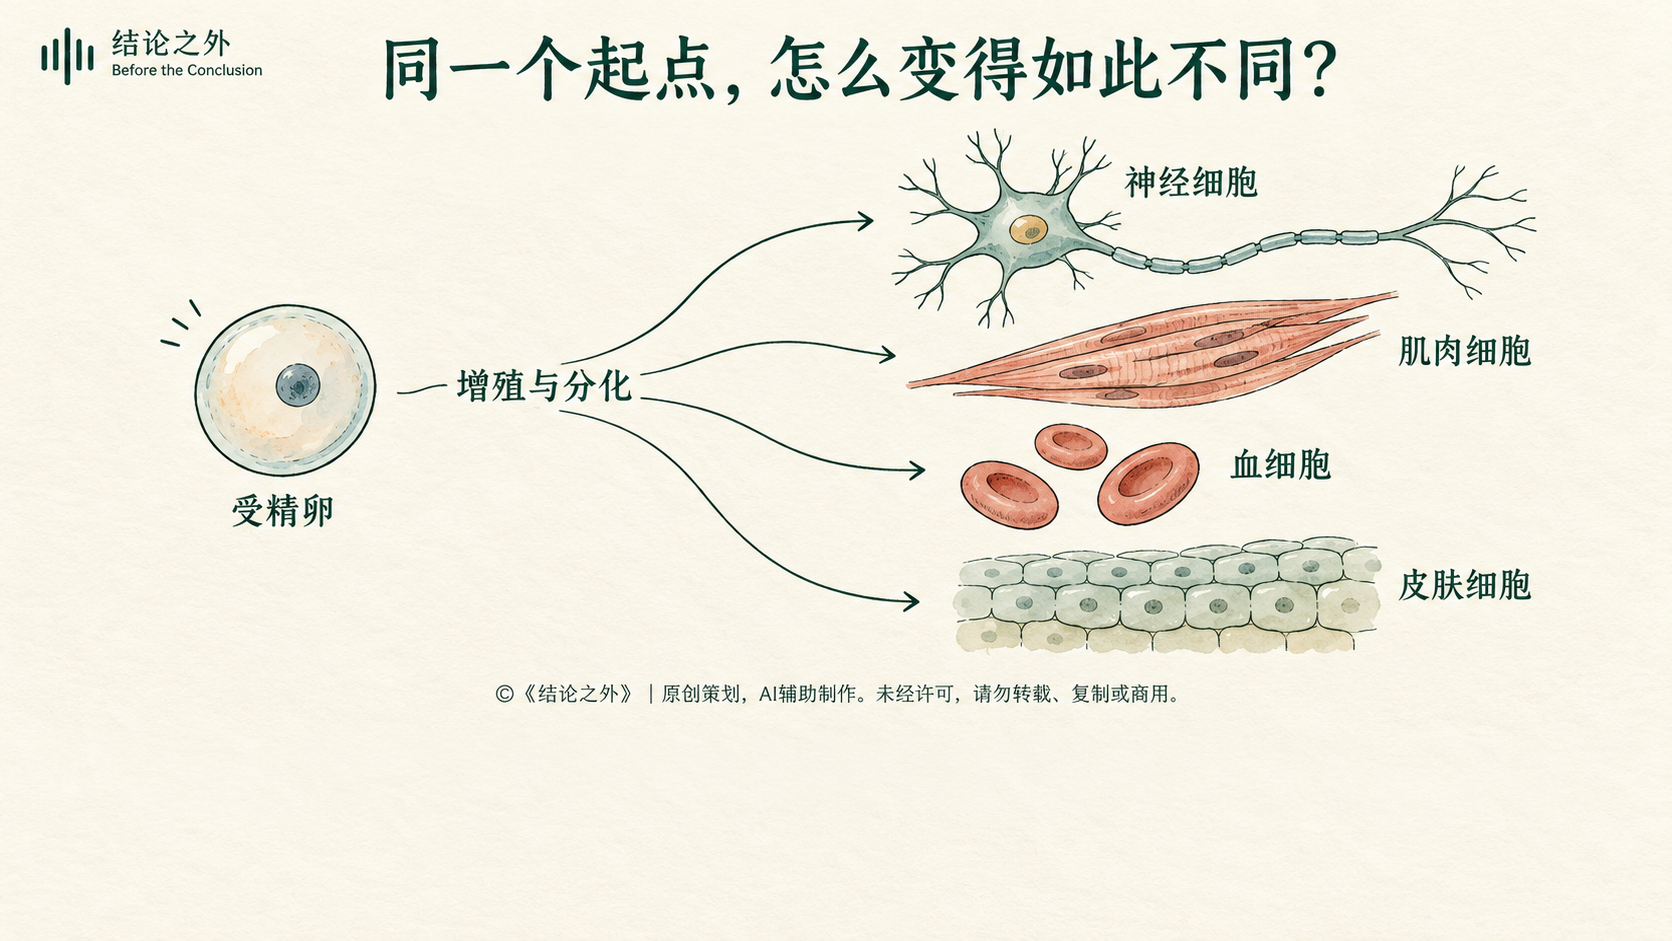
今天,我们已经习惯用DNA解释生命。它保存遗传信息,参与决定生物如何生长,也影响许多疾病的风险。但只要把目光从人与人之间的差异,移到同一个人的身体内部,一个不那么容易回答的问题就出现了:神经细胞和肌肉细胞携带的遗传信息大体相同,为什么它们的形状、功能和生活方式却如此不同?
2026年10月9日,科学作家菲利普·鲍尔在《Quanta Magazine》的一篇文章中重新讨论了这幅画。单细胞技术与数学模型,正在把这个古老比喻推进到可以接受实验检验的层面。[1] 不过,真正值得追问的,既有这幅画终于能够解释什么,也有当数据足够丰富时,我们必须怎样修改它。
一颗小球可以帮助我们进入这个问题。接下来,我们还得走到画的背面。
二、成为一种细胞,需要失去其他可能吗?
我们不妨先设想一种解释:细胞在分化时,会不会把不需要的遗传信息丢掉?
肌肉细胞留下制造肌肉的部分,神经细胞留下制造神经的部分。这样一来,分工就很好理解了。每个细胞只保留自己的那一份,大家各司其职。
但经典实验告诉我们,事情并不如此。
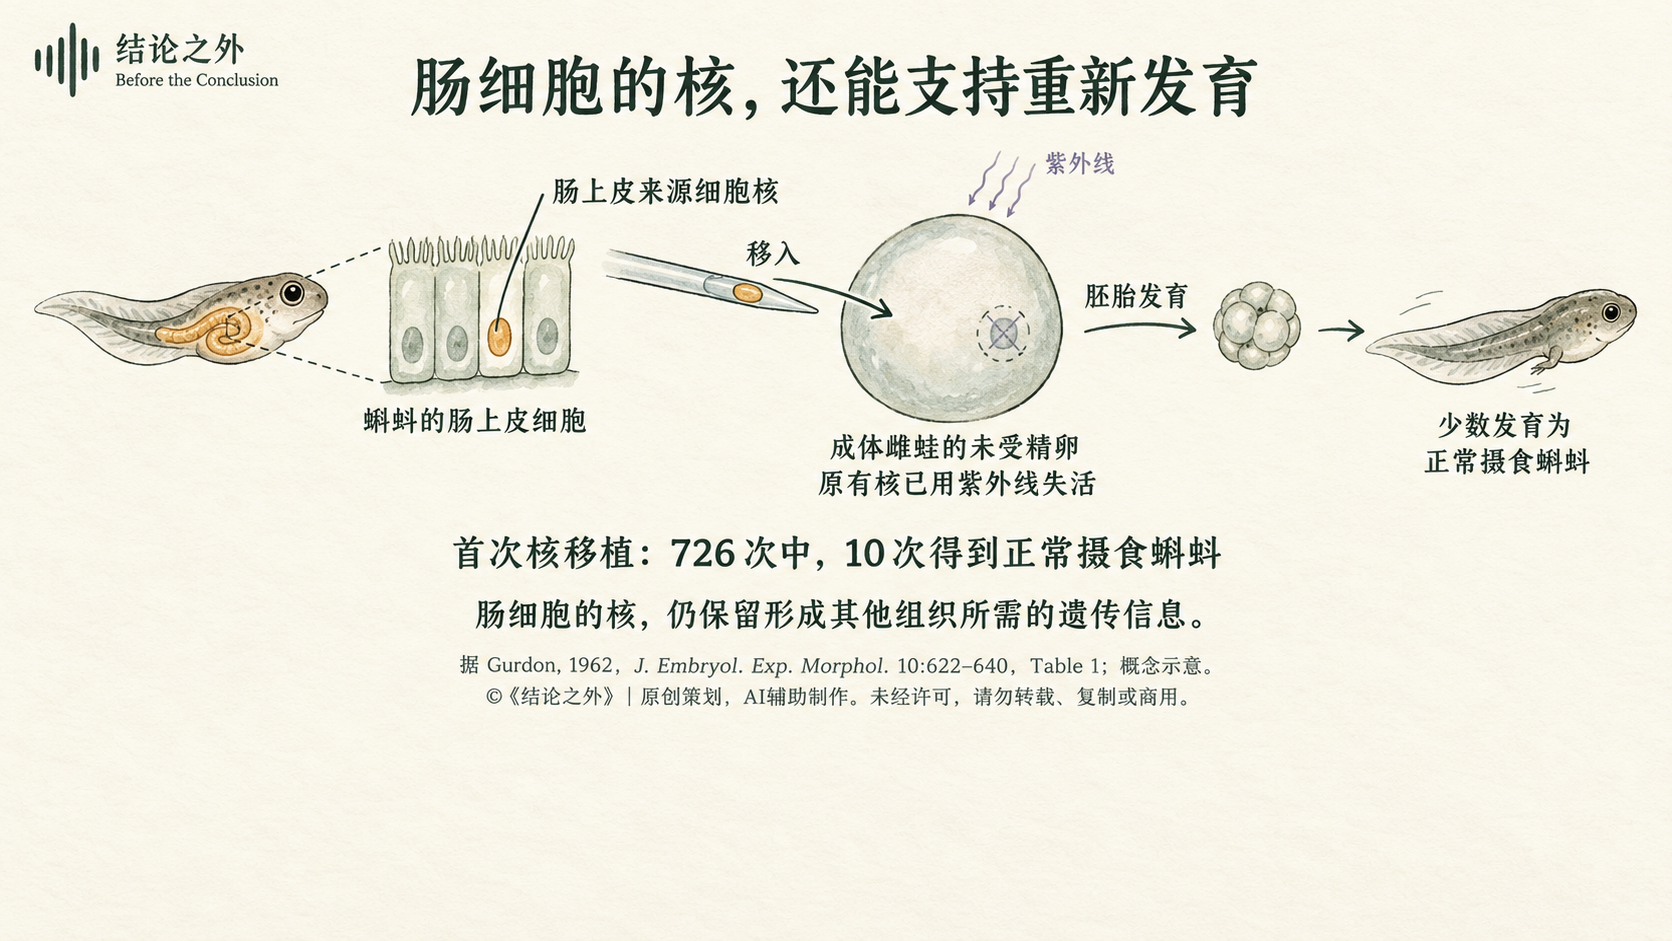
1962年,约翰·格登报告了青蛙细胞核移植研究。他把已经分化的蝌蚪肠上皮细胞的细胞核,移入原有细胞核已被去除或失活的卵细胞中,其中一部分能够支持新的蝌蚪发育。一个曾经服务于肠道功能的细胞核,仍然保存着形成其他组织所需的遗传信息。[3]
这个结果给问题换了一个方向。肠细胞的专门化,并不能简单理解为它已经删掉了成为其他细胞所需的全部内容。相当大的一部分可能性仍然保留在遗传信息里,只是在日常状态下没有被调用。
对同一个人绝大多数有核体细胞来说,分化的关键,主要在于这些信息如何被使用:哪些基因被转录,活跃到什么程度,产生哪些蛋白质,以及这些产物怎样影响接下来的活动。
我们常把这件事概括为“不同细胞开启了不同的基因”。这句话有用,却也容易让问题看上去已经解决。为什么开启的是这一组?谁维持这种组合?原先启动分化的信号消失以后,细胞为什么还能保持自己的身份?
如果回答只是“因为肌肉细胞开启了肌肉基因”,我们其实只是把原来的问题,换了一套听起来更专业的说法。
同样的DNA,容许不同的细胞身份;真正需要解释的,是这些身份怎样产生,又怎样被维持。
©《结论之外》|原创策划 · AI辅助配图。未经许可,请勿转载、复制、修改或商用。
三、沃丁顿画的背面,藏着什么?
在那幅著名景观之外,沃丁顿还画过另一幅图:从下方看这片起伏的地面。
地面像一张被拉扯的柔性薄膜,下面连接着许多绳索,绳索又通向固定的钉子。钉子代表基因,绳索象征基因产生的化学作用;彼此交织的牵拉关系塑造了上方的沟谷。改变某处的牵拉,整片地形都可能受到影响。²

这幅背面图提醒我们,解释细胞分化,需要考虑许多成分之间的关系。早在1942年,沃丁顿就提出:一个生物继承了怎样的遗传组成,与它最终呈现怎样的形态和性状之间,还隔着一整套相互联系的发育过程。我们需要解释的,正是遗传因素怎样通过这些过程,逐步产生可观察到的结果。[4]
用今天的语言说,DNA携带的遗传信息,要通过具体的细胞活动,才会逐步体现为身体的形态和功能。哪些基因在何时、何处发挥作用,细胞怎样分裂、移动、彼此传递信号,又怎样形成组织和器官,都是这个过程的一部分。知道“有哪些基因”,还需要接着追问:这些基因的作用,怎样在发育中衔接起来?
今天,研究者用“基因调控网络”描述其中的重要部分。有些基因产生的蛋白质会促进另一些基因的表达,有些会抑制它们;受到影响的基因,又可能反过来改变原先的调控者。相互促进、相互抑制与反馈,让某些活动组合得以建立,也让另外一些组合难以维持。
这不意味着每一个基因都同等重要。有时,少数调控因子就能改变网络的大范围活动。成纤维细胞主要参与结缔组织的形成与修复,通常不会自行沿着肌肉的路线分化。1987年,研究者在一类培养的小鼠成纤维细胞中,人为引入并表达后来被称为MyoD的调控因子,使其中的细胞转成了肌母细胞——能够进一步形成肌肉的前体细胞。[5]
这个结果很容易被概括为“找到了肌肉的开关”。MyoD是一种能够调节其他基因表达的蛋白质;在合适的条件下,它能带动一组肌肉相关基因及其后续活动,推动细胞转向肌肉分化。这个“开关”的作用,依靠的是它能调动的整套“电路”。调控因子的作用,也取决于它进入了怎样的细胞背景。
可以借一个生活画面来理解这种“背景”:两间房都打开同样的白灯,一间贴着红色壁纸,另一间贴着绿色壁纸,照亮后呈现的景象自然不同。灯光的效果,也取决于房间原有的颜色和布置。
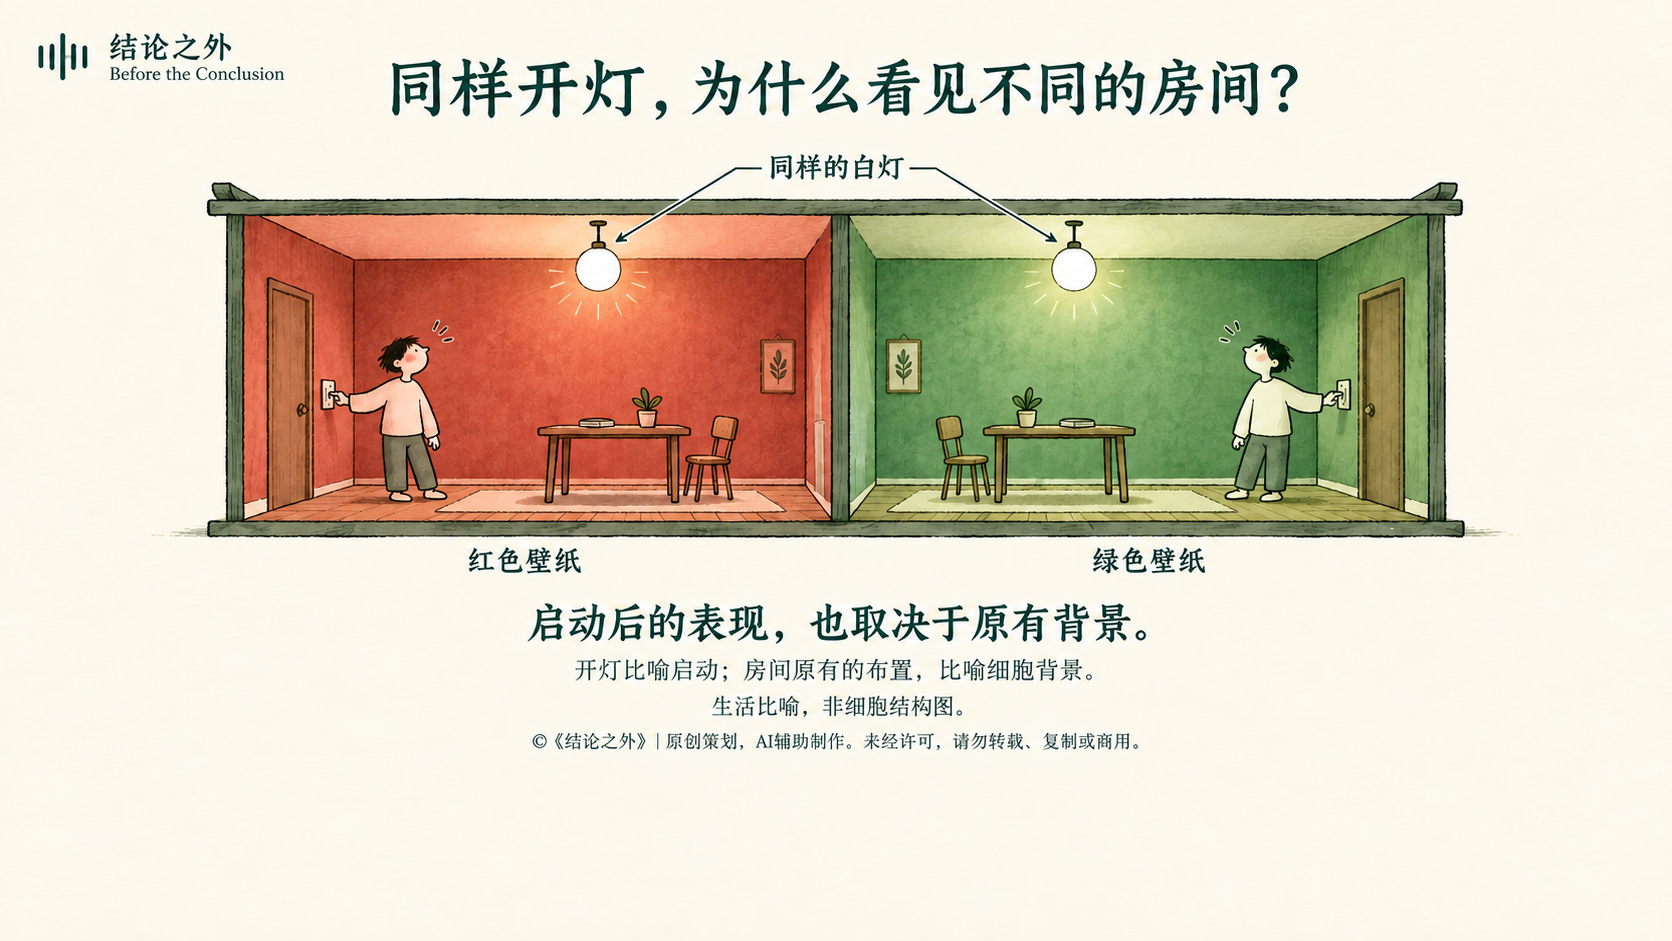
细胞中的“背景”,包括哪些基因区域容易被接近、有哪些调控蛋白已经在场,以及此前接收过什么信号。这些条件会影响同一种调控因子能启动哪些反应、反应能否继续。不过,调控因子还能够改变细胞原有的状态,它的作用比“照亮房间”更主动。[5]
这些调控,也与患者有关
类似的基因表达调控,也出现在患者的病理报告和药物治疗中。
乳腺癌病理报告中的雌激素受体(ER),就是一类能够调节基因表达的蛋白。对部分ER阳性乳腺癌,他莫昔芬通过干预受体的作用,抑制雌激素驱动的肿瘤生长。同一种药在乳腺与骨等组织中的作用又有差别,也提醒我们:调控蛋白所处的细胞背景很重要。[14]
在2型糖尿病治疗中,吡格列酮作用的PPARγ也是一种调节基因表达的蛋白。药物通过激活它,影响糖脂代谢相关基因的表达,帮助改善身体对胰岛素的反应。[15]
另一个常被称为“基因组守护者”的p53,会在DNA受损时参与调动细胞周期停顿、修复和细胞凋亡等反应。许多肿瘤中的TP53基因突变,会使p53的抑癌功能受损,让异常细胞更容易继续增殖。[16]
这些例子让我们看到,基因表达调控既关系到细胞成为谁,也关系到细胞怎样生长、应对损伤和处理营养。
沃丁顿画里的绳索,因此比孤立的钉子更值得多看一眼。我们需要知道有哪些基因,也需要知道它们如何连接、在什么条件下起作用。
四、细胞为什么不会每天重新决定自己是谁?
细胞内部并不安静。分子的产生和降解不断发生,测量到的基因表达水平也会波动。如果任何一点波动都足以改变身份,我们的身体恐怕很难正常运转。
不妨想象一个荒诞的场面:你正举着哑铃,手臂里的肌肉细胞忽然宣布:“我饿了,改当肠细胞吧!”举重还能不能继续,恐怕就得看细胞临时的“职业规划”了。
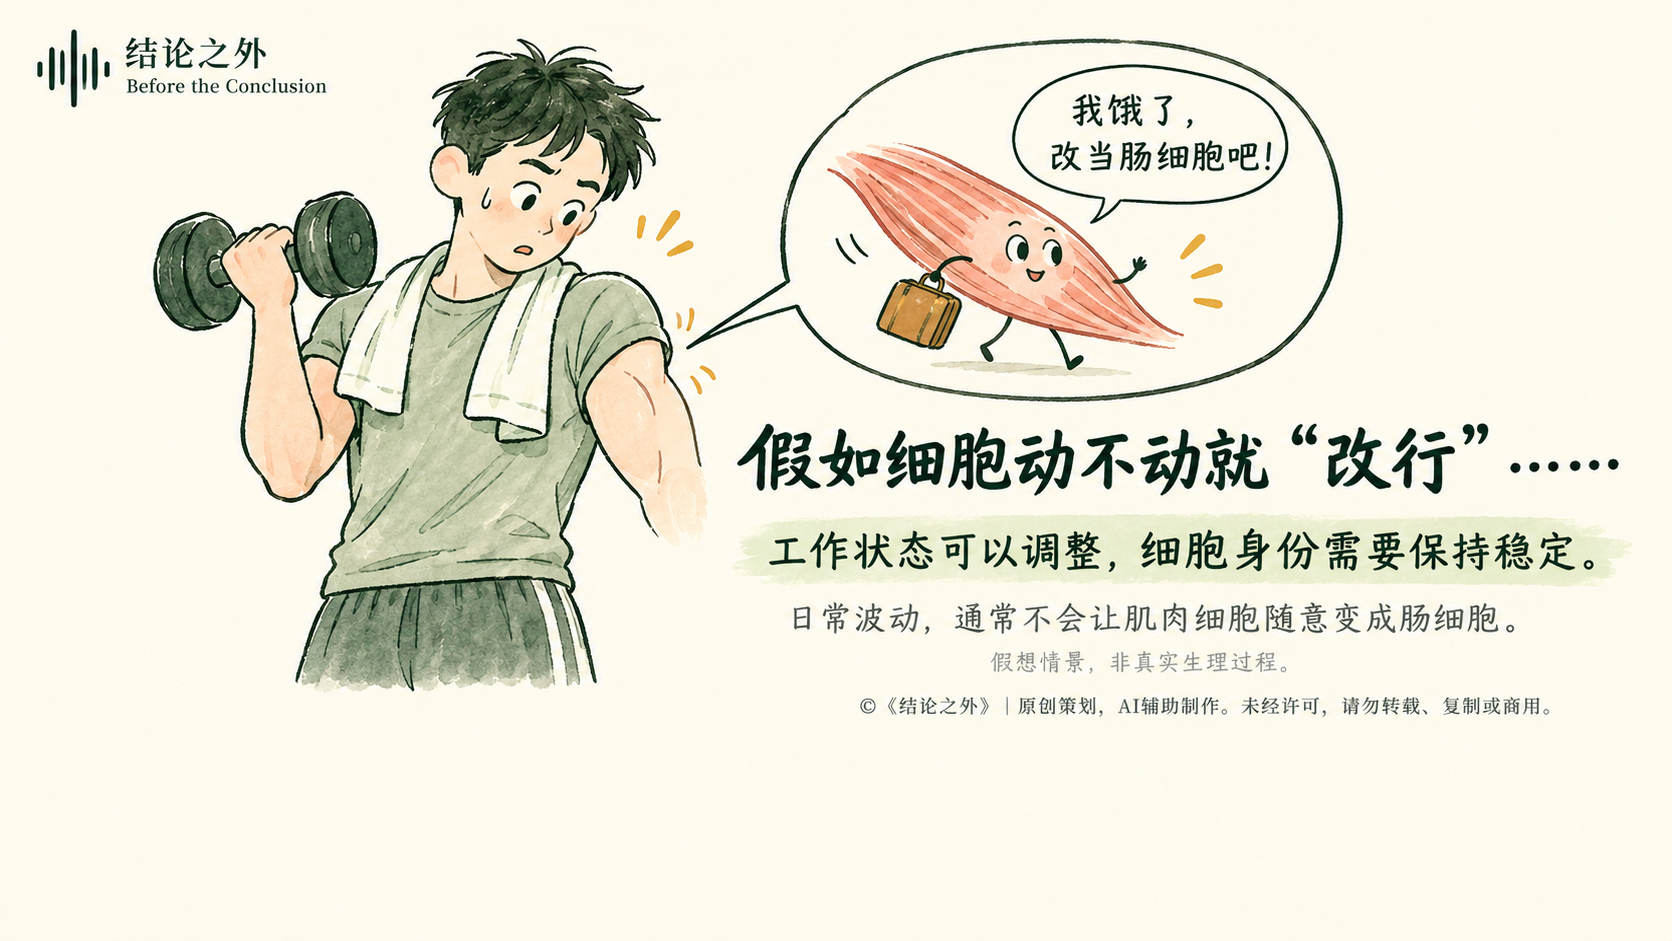
现实中,饥饿和运动会促使肌肉细胞调整代谢与工作状态,却不会因此轻易改成肠细胞。细胞身份的稳定,使它们能够在不断变化的条件下继续承担原有的工作。我们需要解释的,是这种稳定怎样在持续的分子波动中被维持。
景观比喻的力量,就在这里显现出来。
小球落在谷底附近,受到一点扰动,未必立刻翻过山脊。它可以短暂偏离,再回到原来的区域。数学家把系统在一定条件下趋向的稳定状态称为“吸引子”;在一类细胞分化模型中,某种相对稳定的细胞状态,可以用这样的吸引子描述。[6]
这让“稳定”有了一个更准确的含义:它允许局部变化,同时保留整体状态。细胞无需让每个分子的数量都纹丝不动,才能保持自己的基本身份。
关于神经系统发育的研究提供了具体例子。2012年,一项结合小鼠实验与数学模型的研究发现,神经管细胞对一种名为Sonic Hedgehog的信号作出反应时,下游调控网络能够缓冲信号波动,并保留此前信号作用的“记忆”。信号的强度和持续时间,都影响细胞最终的反应。[7]
这里的“记忆”没有意识的含义。它指的是一个系统的反应,会受到它先前经历的影响。同样的外界输入,落在不同历史状态的细胞上,未必得到相同结果。
我们于是能够更清楚地理解,为什么“拥有同样的DNA”并不意味着细胞在每个时刻都拥有同样的可能性。遗传信息之外,正在运行的调控关系与已经经历的过程,也构成了细胞此刻的状态。
可以想象一间坐满十六岁中学生的教室。他们年龄相仿,听着同一位老师讲课,看上去都很认真。但有人正想着自己想成为怎样的人,有人满怀抱负,有人对眼下的学习生活感到不满,也有人担心自己的前途。昨天的一次失利、长久积累的兴趣、刚刚听见的一句话,都可能参与构成每个人此刻的状态。相同的年龄和相似的课堂处境,远不足以说明他们接下来会怎样回应一个问题。
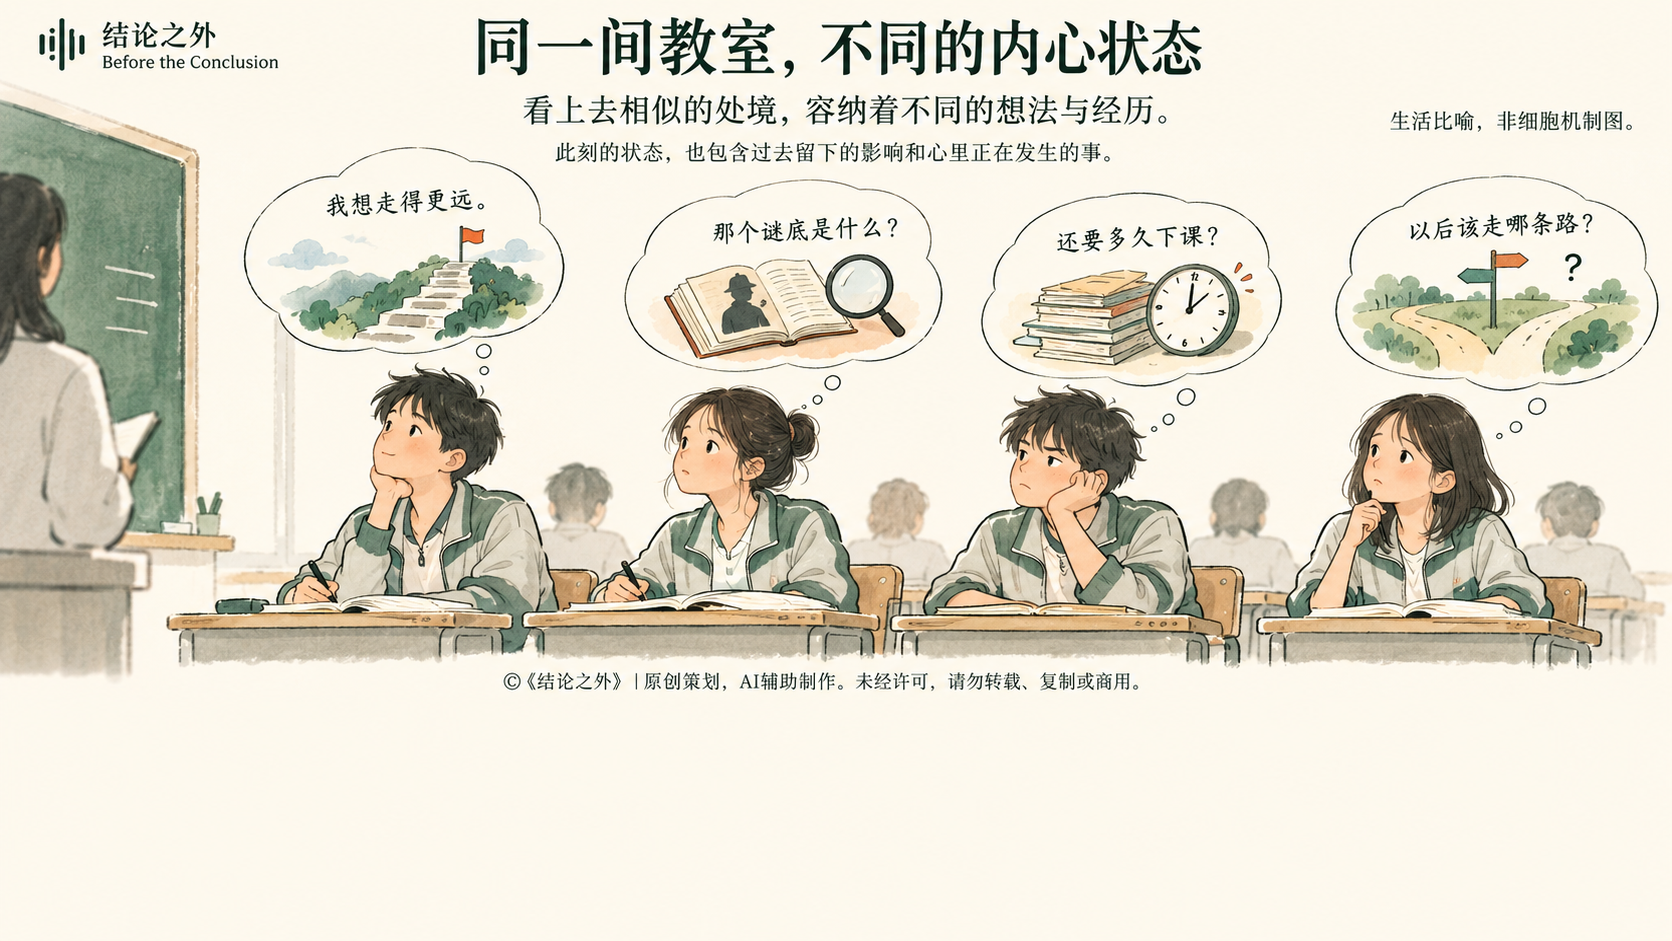
回到细胞,过去的信号和发育过程留下的影响,也会与正在运行的调控关系一起,塑造它对下一次信号的回应。
五、我们终于能够测量这片景观了吗?
沃丁顿画图时,科学家还无法同时读取大量单个细胞的分子活动。今天,单细胞RNA测序让研究者能够比较不同细胞中许多基因对应的RNA水平,再据此描绘细胞之间的差异。
不过,实验得到的数据,并不是一张现成的山谷地图。
每个细胞可以有成千上万个测量值。为了识别结构、展示结果,研究者需要选择变量、进行计算,再把复杂数据投影到较低维度。读者看到的一团团彩色点,往往是这个处理过程的产物。图上两个群体靠近,或者一条线把它们连接起来,本身还不足以证明细胞真实经历过那条路线。
这里还藏着一个更容易忽略的困难:常规单细胞RNA测序通常需要把细胞裂解。研究者获得的是许多细胞在不同状态下的快照,不能在测量之后,再跟着同一个细胞看它明天去了哪里。
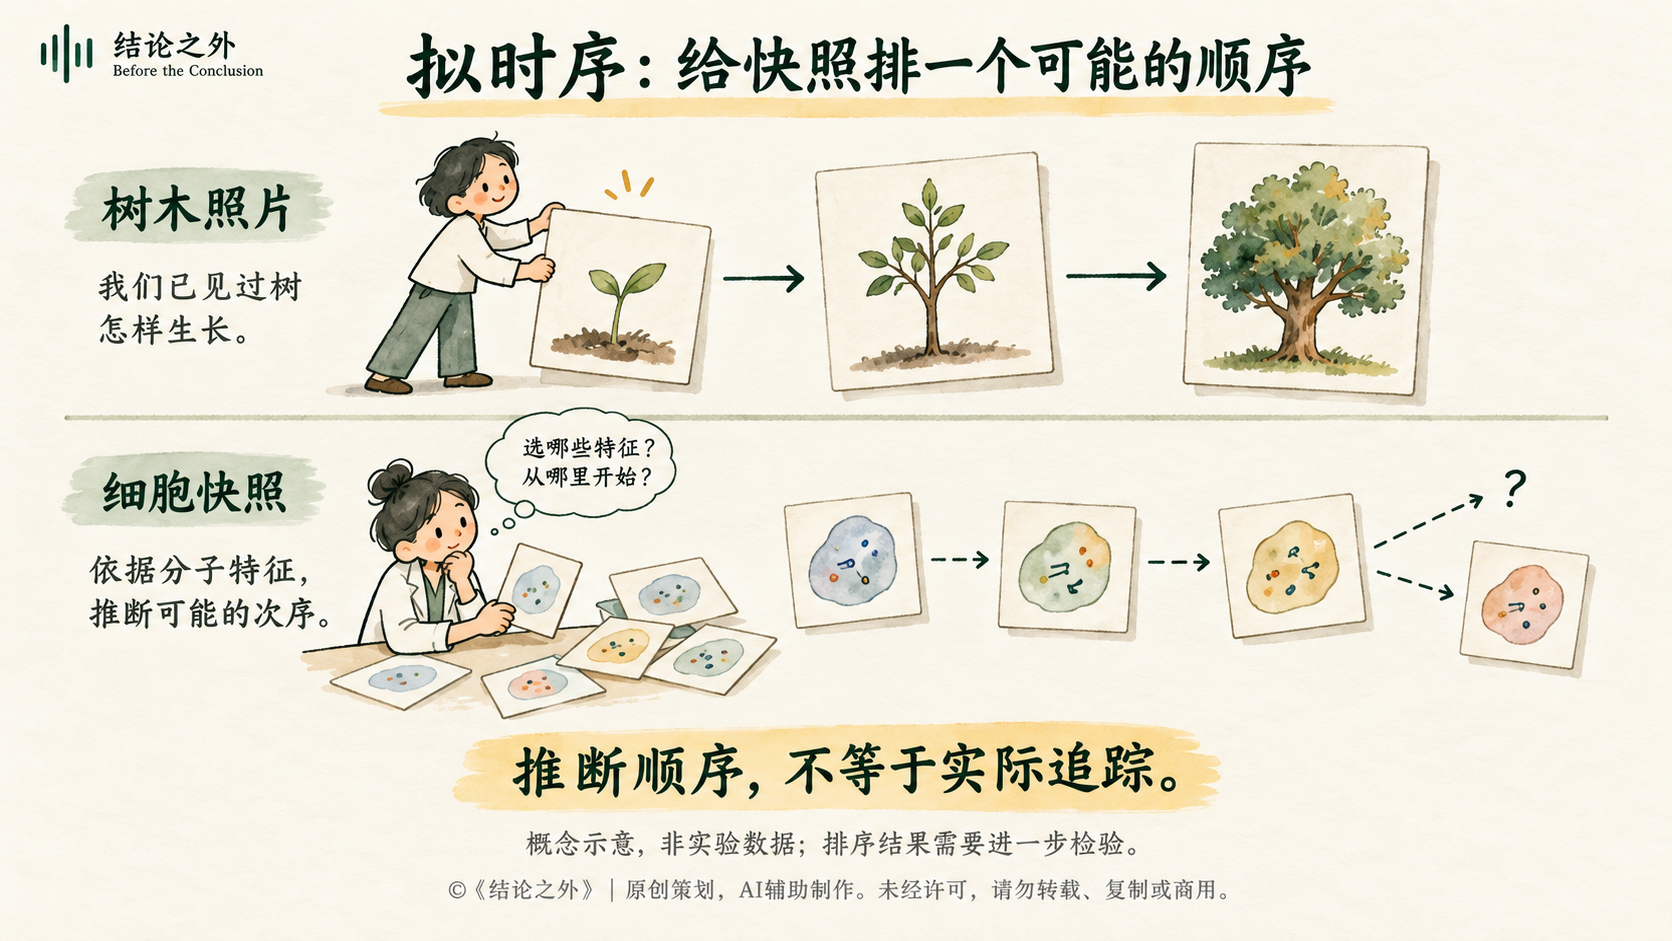
一种办法,是根据细胞之间的分子差异,推断可能的先后顺序。2014年提出的Monocle方法,就尝试用这种“拟时序”推断分化的轨迹。[8]
这有点像一个排序游戏:你拿到一批幼苗、小树和成年树的照片,要把它们排成生长的顺序。不过,这个比喻里藏着一个重要条件——我们已经通过观察,知道树通常怎样从幼苗长大。照片之所以容易排,还因为我们带着对生长过程的已有认识。
面对细胞快照时,许多中间过程恰恰还没有被直接看见。研究者需要依据测得的基因表达等分子特征,把状态相近的细胞联系起来,推断它们可能处在一段过程的什么位置。这里的“先后”,是一种依据数据和模型得到的推断,还需要进一步检验。[8]
已有知识也会参与其中:哪些分子特征值得比较,怎样判断差异,哪一端更适合作为起点,都可能涉及分析方法的选择与生物学判断。例如,研究者可以参考已知的细胞标记或采样时间,帮助确定轨迹的方向。不同方法对这些问题的处理并不相同,因此需要交代分析采用了什么依据和假设,并检验结果是否稳健。[8]
拟时序的价值,在于从大量快照中提出可检验的过程线索。一个排序看起来很顺,还不能证明同一个细胞真实走过了这条路线,也不能直接说明相邻两个位置之间经过了多少小时或多少天。
为了把“此刻像什么”与“后来成为谁”更牢固地联系起来,研究者还会加入谱系追踪。2020年的一项造血研究利用可表达的DNA条形码追踪细胞及其后代,再结合转录组分析。研究还发现,一些命运倾向并不能从单细胞RNA测序中充分读出。[9]
这提醒我们,一张分子快照再精细,也可能遗漏影响未来的因素。理解细胞命运,需要把状态、历史与后续结果联系起来。
©《结论之外》|原创策划 · AI辅助配图。未经许可,请勿转载、复制、修改或商用。
六、数据丰富以后,山谷开始变得不那么规整
经典景观最容易给人的印象,是细胞一路向下,在一个个岔路口作出二选一,最后进入各自的山谷。
现实却会给这幅画添上不那么整齐的线条。
2021年发表在《Cell》的一项研究,分析了153个分别取样的小鼠胚胎,覆盖约36小时的早期发育变化。研究者发现,许多谱系的形成呈现组合式的多向分化,难以用层层嵌套的二选一完整描述。[10]
这不是说发育毫无秩序,而是说,一幅容易理解的分叉图,可能把真实过程画得过于整齐。我们希望有清楚的岔路口,数据却未必总是愿意提供。
2026年8月,《PLOS Biology》又发表了一项神经发育研究。研究者以小鼠胚胎干细胞在体外形成的神经祖细胞为主要研究系统,把单细胞数据、动力系统模型和实验结合起来,分析Sonic Hedgehog信号的作用。他们发现,起初分开的路线,能够通过不同中间过程通向相同的命运;模型还成功预测了未用于拟合的动态信号条件下的细胞反应。[11]
不同路线可以通向相同结果,这使经典画面有了新的可能:有些沟谷会分开,也有些路线能够重新汇合。
而“成功预测”比“画得相像”更有分量。只要足够灵活,我们总能在已有数据周围画出一条看起来合理的路。模型真正接受考验的时刻,是它必须提前说明:改变信号以后,细胞会怎样反应,再让新的实验来检验。
景观本身也需要随条件变化。在动力系统模型中,外界信号可以使某种稳定状态消失,也可以改变细胞转向哪一种状态。研究者因而需要说明,条件怎样塑造可维持的状态,以及细胞怎样在这些状态之间转换。[6]
在发育中的组织里,细胞所处的条件还包括其他细胞提供的信号。细胞之间的交流,使发育成为彼此影响的过程。用景观的语言说,它们既在地形中移动,也参与塑造接下来面对的地形。[1]
这些研究因而支持了一种更具体的解释方式:在所研究的系统中,细胞具有相对稳定的状态,状态之间存在受条件影响的转换,而这些转换可以被建模、预测和检验。画上的高度与坡度有了数学含义,仍然不等于细胞里真的藏着一座小山。
七、小球也能重新上山吗?
如果成熟细胞位于景观下方,一个很自然的问题就是:它能回去吗?
2006年,山中伸弥与高桥和利报告,在特定培养条件下,引入四种调控因子,能够把小鼠成纤维细胞重编程为具有多能性特征的细胞。2007年,他们的团队又在人类成纤维细胞中实现了诱导多能干细胞的生成。[12][13]
这里的“多能”,说的是这些经过重编程的干细胞,重新获得了广泛的分化潜能:在适当条件下,它们可以进一步形成神经细胞、肌肉细胞、血细胞等,潜能覆盖构成人体的几乎所有细胞类型。但这并不意味着单个这样的细胞,能够独立发育成一个完整的人。
回到景观比喻,我们仿佛看到小球重新获得了进入其他山谷的机会。但这里的“回去”,不能简单理解为把原来的下山录像倒着播放。研究者引入调控因子,并配合特定的培养条件,改变细胞内部的调控关系,使它重新进入具有多能性的状态。[12][13]
实验建立的是一条能够实现这种转变的路径。它并不意味着细胞逐步倒走了自然分化的全部过程,也不能据此认定这些实验条件是唯一可行的条件,或已经完整还原了胚胎内形成和维持多能状态的环境。“怎样诱导细胞进入某种状态”与“怎样让它持续维持这种状态”,也是相关但不同的两个问题。
这使格登实验留下的那个问题,获得了新的推进。已经形成专门功能的细胞,仍可能保留在特定条件下被重新调用的潜能。它的细胞身份虽然已经确立,并且在日常条件下相当稳定,却仍可能在特定干预下发生改变。
对再生医学来说,这种理解带来了清楚的研究方向:怎样建立需要的细胞状态,怎样提高到达目标的比例,又怎样让它在后续环境中保持合适的功能?“看起来更像目标细胞”只是其中一项观察,我们还需要知道它实际上能做什么。
细胞命运可以被改变,意味着我们有机会学习如何干预;能够干预到什么程度,仍然要由具体实验回答。
八、一幅画改变的,可能是我们提问的方式
走到这里,再看沃丁顿的小球,我们已经很难把它理解为一条预先画好、只需走完的路线。
基因、调控网络、细胞状态、外界信号与发育历史,需要被放进同一个解释中。遗传信息使许多过程成为可能,具体的分子活动和相互作用,则让这些可能性在一定时间与空间里变成现实。
这里也有一个值得保留的思想问题:当我们问一个生命系统“是什么”时,究竟希望找到什么样的答案?
如果答案只是一份成分清单,我们会得到许多重要信息,却仍然可能不知道它怎样运转。列出一场演奏中使用的所有乐器,并不能让我们听见那首曲子。同样,辨认出参与发育的基因,也还需要继续理解它们之间的联系、作用顺序与反馈。
这并不是要用一个漂亮比喻替代分子机制。恰恰相反,一个好的比喻应当帮助我们提出更具体的问题:哪一种状态能够维持?改变什么条件会使它失稳?两种看似相同的细胞,未来是否真的相同?模型预测的路线,能否经得住追踪与干预实验?
“命运”这个词当然很容易引出人生联想。但细胞分化的证据,不能直接用来证明人能否改变自己,也不能替我们回答自由意志的问题。它提供的启发更有限,也更扎实:已经形成的结果,需要放回使它形成并得以维持的条件中理解;稳定与不可改变,是两个不同的问题。
沃丁顿的画能够流传这么久,或许就在于它给一个难以直接看见的过程,提供了可以开始讨论的形状。而现代研究对它最好的继承,是把其中的山谷、岔路和牵拉关系,逐渐变成能够被测量与质疑的问题。
一幅画的价值,可以是让我们终于看见一个问题。它更长久的生命,则来自后来的人愿意带着数据回来,擦掉几条线,再画上几条新的。
那颗小球仍在山坡上。现在,我们开始有办法弄清楚,它为什么会走向那里。
延伸阅读与参考材料
本文由Quanta报道引出选题,结合科学史资料与原始研究独立展开,并非原文翻译。以下列出原始研究、科学史资料与原画查看链接,供延伸阅读与核对。
Philip Ball. “How Does Life Unfold? A Landscape Metaphor Comes Into Its Own.” Quanta Magazine, 2026-10-09。选题来源与当代研究背景。
https://www.quantamagazine.org/how-does-life-unfold-a-landscape-metaphor-comes-into-its-own-20261009/C. H. Waddington. The Strategy of the Genes, 1957。表观遗传景观见图4(第29页);从下方观察景观、以绳索和钉子呈现其牵拉关系的图见图5(第36页)。正文角标²对应本条。
查看原书数字版、原画与许可说明(Wellcome Collection)。该馆标注的数字版许可为CC BY-NC 4.0。本文仅提供原画的外部查看链接,不转载原画;封面与内文配图均为依据科学概念独立绘制的示意图。
历史背景另参见亚利桑那州立大学 Embryo Project Encyclopedia:Adam R. Navis, “Epigenetic Landscape,” 2007-10-30。J. B. Gurdon. “The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles.” Journal of Embryology and Experimental Morphology, 1962;10:622–640。另参见2012年诺贝尔生理学或医学奖官方科学背景介绍。
https://pubmed.ncbi.nlm.nih.gov/13951335/
https://www.nobelprizemedicine.org/wp-content/uploads/2012/10/PR_2012_01.pdfC. H. Waddington. “The Epigenotype.” 原发表于1942年,重刊于 International Journal of Epidemiology, 2012;41(1):10–13。DOI: 10.1093/ije/dyr184。
https://academic.oup.com/ije/article-abstract/41/1/10/648029R. L. Davis, H. Weintraub, A. B. Lassar. “Expression of a single transfected cDNA converts fibroblasts to myoblasts.” Cell, 1987;51(6):987–1000。DOI: 10.1016/0092-8674(87)90585-X。
https://pubmed.ncbi.nlm.nih.gov/3690668/
MyoD调控肌肉基因及改变染色质状态的机制,另参见:A. N. Gerber et al. “Two domains of MyoD mediate transcriptional activation of genes in repressive chromatin: a mechanism for lineage determination in myogenesis.” Genes & Development, 1997;11(4):436–450。DOI: 10.1101/gad.11.4.436。
https://pubmed.ncbi.nlm.nih.gov/9042858/M. Sáez et al. “Statistically derived geometrical landscapes capture principles of decision-making dynamics during cell fate transitions.” Cell Systems, 2022;13(1):12–28.e3,2021-09-17在线发表。DOI: 10.1016/j.cels.2021.08.013。
https://pubmed.ncbi.nlm.nih.gov/34536382/
https://pmc.ncbi.nlm.nih.gov/articles/PMC8785827/N. Balaskas et al. “Gene regulatory logic for reading the Sonic Hedgehog signaling gradient in the vertebrate neural tube.” Cell, 2012;148(1–2):273–284。DOI: 10.1016/j.cell.2011.10.047。
https://pubmed.ncbi.nlm.nih.gov/22265416/C. Trapnell et al. “The dynamics and regulators of cell fate decisions are revealed by pseudotemporal ordering of single cells.” Nature Biotechnology, 2014;32:381–386。DOI: 10.1038/nbt.2859。
https://www.nature.com/articles/nbt.2859
https://pubmed.ncbi.nlm.nih.gov/24658644/
关于拟时序方法的假设、起点选择与分析稳健性,另参见原始方法研究:K. Street et al. “Slingshot: cell lineage and pseudotime inference for single-cell transcriptomics.” BMC Genomics, 2018。DOI: 10.1186/s12864-018-4772-0。
https://pmc.ncbi.nlm.nih.gov/articles/PMC6007078/C. Weinreb et al. “Lineage tracing on transcriptional landscapes links state to fate during differentiation.” Science, 2020;367(6479):eaaw3381。DOI: 10.1126/science.aaw3381。
https://pubmed.ncbi.nlm.nih.gov/31974159/M. Mittnenzweig et al. “A single-embryo, single-cell time-resolved model for mouse gastrulation.” Cell, 2021;184(11):2825–2842.e22。DOI: 10.1016/j.cell.2021.04.004。
https://pubmed.ncbi.nlm.nih.gov/33932341/M. Fontaine et al. “Dynamic Landscape Analysis of cell fate decisions provides predictive models of neural development from single-cell data.” PLOS Biology, 2026;24(8):e3003953,2026-08-26发表。DOI: 10.1371/journal.pbio.3003953。
https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.3003953K. Takahashi, S. Yamanaka. “Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors.” Cell, 2006;126(4):663–676。DOI: 10.1016/j.cell.2006.07.024。
https://pubmed.ncbi.nlm.nih.gov/16904174/K. Takahashi et al. “Induction of pluripotent stem cells from adult human fibroblasts by defined factors.” Cell, 2007;131(5):861–872。DOI: 10.1016/j.cell.2007.11.019。
https://pubmed.ncbi.nlm.nih.gov/18035408/美国国家癌症研究所(NCI),“Hormone Therapy for Breast Cancer”;NCI SEER,“ESR1”。用于核对雌激素受体的转录调控作用,以及他莫昔芬等药物的作用机制与组织差异。
https://www.cancer.gov/types/breast/treatment/hormone-therapy
https://seer.cancer.gov/seertools/glossary/view/555a1f38e4b031c70bba8ea5/?q=%5EEDailyMed,“PIOGLITAZONE tablet”,处方说明书第12.1节(作用机制)。用于核对吡格列酮、PPARγ与胰岛素敏感性的关系。
https://www.dailymed.nlm.nih.gov/dailymed/drugInfo.cfm?setid=692e662a-3b31-42c3-a075-42abe44c74db美国国家医学图书馆,MedlinePlus Genetics,“TP53 gene”。用于核对p53在DNA损伤应答、细胞增殖控制及肿瘤中的作用。
https://medlineplus.gov/genetics/gene/tp53/
文字与图片使用声明
本文由《结论之外》独立撰写,资料来源见文末。配图由《结论之外》策划并借助AI工具制作。欢迎分享本文网页链接;未经许可,请勿复制、搬运、截图另发或单独使用图片,不得商用。